Kako spol in čas dneva vplivata na verbalni spomin?
Rezultati številnih raziskav kažejo, da verbalni spomin ni povsem stalen, temveč se njegova učinkovitost čez dan lahko spreminja pod vplivom različnih fizioloških in okoljskih dejavnikov, kot so čas dneva, kronotip posameznika in prisotnost hrupa v ozadju. Kljub temu ni povsem jasno, v kakšni meri na ta nihanja vplivajo spol in nihanja ženskih hormonov v primerjavi z omenjenimi okoljskimi in fiziološkimi vplivi. V predstavljeni raziskavi smo preverjali, ali se sposobnost učenja in pomnjenja besed razlikuje med spoloma, ter ali je nihanje verbalnega spomina čez dan močnejše pri ženskah v nizkohormonski fazi. V raziskavi je sodelovalo 23 odraslih s povprečno starostjo 20 let, vsi z vmesnim do poznim kronotipom. Uporabili smo prilagojen Reyjev test slušnega učenja besed (RAVLT) ter med drugim preverjali vpliv hrupa v ozadju. Rezultati niso pokazali statistično pomembnih učinkov časa dneva, spola, niti interakcije med njima, ne glede na hrup v ozadju. Ženske v nizkohormonski fazi so kazale enake rezultate kot moški. Potemtakem sklepamo, da verbalni spomin pri tej skupini ni bil občutljiv na čas testiranja ali prisotnost hrupa. Za bolj zanesljivo posploševanje ugotovitev pa so vseeno potrebne nadaljnje raziskave z večjim in bolj raznolikim vzorcem, natančnejšim spremljanjem celotnega hormonskega ciklusa ter natančnejšo kontrolo kronotipov in zunanjih motečih dejavnikov.
Uvod
Človeško telo deluje v skladu s približno 24-urnimi cirkadianimi ritmi, ki uravnavajo številne fiziološke in vedenjske procese, kot so spanje in budnost, telesna temperatura, metabolizem in sproščanje hormonov (Cajochen in Schmidt, 2025; Valdez idr., 2014). Ti ritmi se razlikujejo od osebe do osebe, kar se kaže v osebnih naravnih preferencah glede časa aktivnosti in počitka, čemur se reče kronotip (Evansova idr., 2022). Kronotipi v populaciji sledijo naravni (zvonasti) porazdelitvi, pri čemer je večina ljudi vmesnih, skrajno zgodnjih in skrajno poznih pa je manj. Kronotip najpogosteje določimo z Münchenskim vprašalnikom kronotipa ([MCTQ]; Roenneberg idr., 2003), ki na podlagi časa spanja v dneh brez obveznosti izračuna sredino spanja (MSFsc). Sredina spanja predstavlja točno sredino časovnega intervala med začetkom spanja in prebuditvijo (npr. pri spanju od 00.00 do 08.00 je sredina spanja ob 4.00). Le-ta se v dneh brez obveznosti v populaciji giblje od 5.00 do 11.00 (Kelly idr., 2022), pri čemer višja vrednost pomeni poznejši kronotip. Zgodnji kronotipi ali »škrjančki« so najbolj pozorni in učinkoviti zjutraj, medtem ko pozni kronotipi ali »sove« najboljše delujejo popoldne ali zvečer (Facer-Childs idr., 2018). Vmesni kronotip je v populaciji najpogostejši in zajema posameznike brez izrazite jutranje ali večerne preference (Adan idr., 2012; Roenneberg idr., 2003). Ko posameznik ob svojem optimalnemu času dneva doseže boljše rezultate, se temu učinku reče učinek sočasnosti (Lehmann idr., 2013). Do tega pride lahko ko, na primer, posameznik z zgodnjim kronotipom pri reševanju zahtevnega kognitivnega testa ob 8. uri zjutraj izkazuje pomembno višji nivo pozornosti in višjo natančnost kot ob opravljanju enakega testa ob 18. uri zvečer (Goldstein idr., 2007)
Primer sposobnosti, ki nihajo čez dan, so kognitivne funkcije, odvisne od različnih možganskih področij. Procesi, odvisni od prefrontalnega korteksa, kot so npr. pozornost, izvršilne funkcije in delovni spomin, kažejo izrazite dnevne variacije, in so optimizirane v času dnevne svetlobe (Valdez idr., 2012). Podobna nihanja so opazili tudi pri procesih, povezanih s hipokampusom, ki je ključen za učenje in spomin (Gorfine in Zisapel, 2007; Pötzl idr., 2024). Pötzl in sodelavci (2024) so npr. ugotovili, da se prepoznavanje obrazov, odvisno od hipokampusa, pri mladih moških razlikuje med jutrom in večerom. Omenjena nihanja izhajajo iz notranje biološke ure, ki je povezana z osrednjim cirkadianim oscilatorjem v suprakiazmatičnem jedru. Ta se prek svetlobe usklajuje s 24-urnim ciklom. Le-ta uravnava dnevno izločanje melatonina in kortizola ter nihanje telesne temperature, ki vplivajo na delovanje živčnega sistema. Ti učinki se potemtakem izražajo tudi v prefrontalnem korteksu in hipokampusu, kar razloži razlike delovanja procesov skozi dan, ki so vezani na ta del možganov, (Borbély idr., 2016; Valdez idr., 2012).
Predvsem pa je pomembno, da ti dnevni vzorci niso univerzalni, temveč so odvisni od posameznikovega kronotipa. Zgodnji kronotipi dosegajo najboljše rezultate okoli 8.00 zjutraj, medtem ko je za pozne kronotipe to značilno ob 20.00 zvečer (Facer-Childs idr., 2018). Raziskava Facer-Childs in sodelavcev (2018) je pokazala, da pri zgodnjih kronotipih zmogljivost upada čez dan, pri poznih kronotipih pa se z budnostjo izboljšuje. To velja še posebej za reakcijski čas, pozornosti in izvršilne funkcije (Facer-Childs idr., 2018). Pri tem pa je treba biti pozoren, da vzorec ni povsem enoznačen. Smer in obseg dnevnih nihanj sta namreč odvisna od vrste zmogljivosti (npr. kognitivne ali telesne/gibalne zmogljivosti; Munnilari idr., 2024). Poleg tega je učinek sočasnosti bolj izrazit pri poznih kronotipih kot pri zgodnjih (Facer-Childs idr., 2018). Facer-Childs in sodelavci (2018) to pojasnujejo s tem, da pozni kronotipi zjutraj dosežejo nižjo raven zmogljivosti zaradi jutranje zaspanosti in neskladja z biološko uro, medtem ko ob svojem vrhuncu zvečer dosežejo izrazito večji skok v zmožnostih kot zgodnji kronotipi v svojih optimalnih urah. Prav zaradi tega smo se v naši raziskavi osredotočili izključno na posameznike z vmesnim do poznim kronotipom, saj je bilo pričakovano, da bodo morebitni učinki časa dneva pri le-teh lažje opazni.
Ker na kognitivno zmogljivost vpliva tudi kakovost spanja, jo velja preveriti, kar je pogosto narejeno z Groningensko lestvico kakovosti spanja ([GSQS]; Mulder-Hajonides van der Meulen, 1984), ki meri kakovost spanja v pretekli noči, in Pittsburško lestvico ([PSQI]; Buysse idr., 1989), ki meri kakovost spanja v preteklem mesecu.
Poleg kronotipa in kakovosti spanja je biološki spol še en dejavnik, ki vpliva na kognitivno zmogljivost. Pri tem je treba poudariti, da spol ni zgolj binaren, in da razdelitev na moške in ženske ne zajame vseh oseb. V naši študiji pa so bili podatki zbrani in obdelani zgolj v okviru binarne opozicije moški-ženska. Zatorej izsledki v nadaljevanju izhajajo iz te ‘delitve’. Študije kažejo, da po puberteti moški v povprečju dosegajo boljše rezultate na prostorskih nalogah, kot so Shepard-Metzlerjeva naloga in Vandenberg-Kusejev test mentalne rotacije, medtem ko ženske prekašajo moške na verbalnih nalogah, kot so naloge verbalne fluentnosti in priklica besed (Alonso idr., 2021; Andreano in Cahill, 2009; Voyer idr., 2021). Obe omenjeni prostorski nalogi merita sposobnost mentalne rotacije, pri čemer morajo udeleženci v mislih zavrteti 3D- ali 2D- geometrične objekte ter ugotoviti, ali sta prikazani obliki enakih dimenzij oziroma le zrcalno spremenjeni. Te razlike so lahko povezane z več dejavniki, med drugim s spolnimi hormoni (npr. estrogeni, progesteronom in testosteronom), živčnimi strukturami ter različnimi zgodnjimi izkušnjami in socializacijo. Pri tem imajo pomembno vlogo izkušnje s prostorskimi dejavnostmi (kot so igranje z gradniki, 3D-videoigre ali šport) ter verbalnimi spodbudami v otroštvu, ki preko nevroplastičnosti dodatno oblikujejo in krepijo posamezne kognitivne sposobnosti. Prednost žensk na verbalnih nalogah ostane tudi po nadzoru verbalnih intelektualnih sposobnosti (Alonso idr., 2021; Gale idr., 2007) ter se razširja na verbalni epizodični spomin (Voyer idr., 2021). Verbalno učenje in epizodični spomin pogosto merimo z Reyevim testom slušnega učenja besed (Rey Auditory Verbal Learning Test [RAVLT]; Rey, 1941). Pri njem si udeleženec skozi pet ponovitev poskuša zapomniti seznam besed. Nato jih prikliče takoj in po krajšem zamiku, medtem ko se vmes predstavi še moteči seznam. Prednost žensk v tej vrsti nalog pa raziskave kažejo tudi v poznejšem življenjskem obdobju (Bleecker idr., 1988; Gale idr., 2007). Vse to nakazuje na obstojno in trajno prednost žensk pri verbalnem učenju in spominu, pri čemer njihovega izvora ni mogoče pripisati zgolj enemu dejavniku.
Ker so spolni hormoni eden izmed dejavnikov, ki lahko prispevajo k biološkim razlikam med moškimi in ženskami, so raziskovalci preučevali njihov vpliv na kognitivne razlike. Ženski menstrualni cikel običajno traja približno 29,6 dni (Faust idr., 2019), z značilnimi hormonskimi nihanji. Estrogen in progesteron nihata čez cikel. Pri večini sta najnižja med zgodnjo folikularno fazo, torej v prvih dneh ciklusa od začetka menstruacije, ko v jajčniku dozoreva folikel. Najvišja sta v periovulatorni fazi, ki zajema kratko obdobje okoli ovulacije na sredini ciklusa, ter v srednji lutealni fazi, ki sledi ovulaciji v drugi polovici ciklusa. Spolni hormoni ne vplivajo le na plodnost, marveč lahko vplivajo tudi na verbalni spomin in učenje (Genzel idr., 2012). Raziskave so pokazale, da so višje ravni ženskih spolnih hormonov povezane z boljšim verbalnim učenjem in spominom (Baskaran idr., 2017; Drake idr., 2000). Ženske v zgodnji folikularni fazi (med menstruacijo), ko so ravni hormonov najnižje, naj bi potemtakem dosegale slabše rezultate kot v ostalih fazah. Prav tako bi lahko v tej nizkohormonski fazi dosegale rezultate, podobne moškim. Vseeno pa na kognitivno uspešno poleg hormonskih nihanj vplivajo tudi drugi dejavniki, kot so čas dneva, kakovost spanja, kronotip in okoljski pogoji.
Moški in ženske se namreč razlikujejo tudi v cirkadianih fizioloških značilnostih. Ženske imajo v povprečju nekoliko zgodnejši kronotip in nekoliko krajši cirkadiani ritem (Duffy idr., 2011; Randler in Engelke, 2019). Notranja biološka ura namreč ne znaša vedno točno 24 ur. Kadar je ta cikel krajši, se ritem spanja in budnosti umesti bolj zgodaj v dan. To se kaže kot bolj jutranji kronotip. Duffy in sodelavci (2011) so tako ugotovili, da je ta cikel pri ženskah v povprečju približno šest minut krajši kot pri moških. Poleg tega so ženske nekoliko bolj občutljive na cirkadiano neusklajenost zaradi situacij, kot so zamik časovnega pasu ali izmensko delo. Vendar pa je pri tem treba poudariti, da gre za povprečne populacijske tendence in ne za absolutne razlike. Občutljivost na cirkadiano neusklajenost je namreč v veliki meri odvisna od individualne variabinosti (tako znotraj moškega kot ženskega spola), na katero močno vplivajo tudi drugi dejavniki, kot so kronotip, starost, življenski slog, delovne obveznosti ter družbene in družinske okoliščine. Vseeno pa so pri ženskah v takih primerih namreč opazili več nespečnosti, depresije (Torquati idr., 2019) in višje tveganje za demenco (Jørgensen idr., 2021). Prav tako so ženske bolj prizadete zaradi kratkotrajnega pomanjkanja spanja na kognitivnih nalogah (Rångtell idr., 2019) in manj izkoristijo koristi dremeža, še posebej ko so v nizkohormonskem stanju (Sattari idr., 2018). To kaže na zaščitno vlogo ženskih spolnih hormonov (Harrington idr., 2022).
Poleg občutljivosti na cirkadiane motnje so ženske v povprečju morda bolj občutljive tudi na slušne dražljaje. Nekatere raziskave kažejo, da ženske ob prisotnosti hrupa v ozadju poročajo o večji utrujenosti in razdraženosti, ter da hrup bolj poslabša njihovo kognitivno zmogljivost (Abbasi idr., 2022). Na občutljivost in odziv na hrup sicer močno vplivajo tudi splošnejši dejavniki, ki veljajo za vse spole, med njimi tudi raven stresa, že nakopičena utrujenost, individualna senzorna občutljivost, strategije obvladovanja stresa ter narava samega dela ali okolja. Vpliv hrupa na samo kognitivno zmogljivost je med drugim odvisen tudi od ravni hrupa in miselne obremenitve. Masullo in sodelavci (2021) so ugotovili, da ženske na verbalnih nalogah, ki jih sicer v povprečju rešujejo boljše kot moški, slabše opravijo v okolju s spremenljivo glasnostjo hrupa. Zato smo v naši raziskavi vključili tudi pogoj s hrupnim ozadjem. Poudariti pa je treba, da se tovrstne razlike pojavljajo na ravni skupin in ne pri vseh posameznikih, ter da enostavne neposredne povezave ni mogoče vzpostaviti, saj slušna funkcija žensk niha skladno s spolnimi hormoni tekom menstrualnega cikla (Aloufi idr., 2023), pri moških pa v odvisnosti od cirkadianih ter sezonskih nihanj testosterona, pri čemer na oba spola pomembno vplivajo tudi raven kortizola, utrujenost in starost (Caras, 2013, Nevison in Parker, 2021; Parveen idr., 2021).
Celoten namen študije je bil ugotoviti, ali se učinki časa dneva na verbalni spomin razlikujejo med moškimi in ženskami. Ker sta učinek sočasnosti in časovna občutljivost bolj izrazita pri poznih kronotipih (Facer-Childs idr., 2018), smo se osredotočili na to populacijo, za namene večanja statistične moči pa smo v vzorec vključili tudi posameznike z vmesnim kronotipom. Postavljene so bile naslednje hipoteze:
1. Pri osebah s poznim kronotipom bosta verbalno učenje in spomin boljša v popoldanskem (optimalnem) času kot v jutranjem (neoptimalnem) času.
2. Ženske v nizkohormonski fazi bodo v neoptimalnem času (zjutraj) pokazale pomembno večji padec uspešnosti kot moški, medtem ko se v optimalnem času (popoldne) med njihovimi rezultati in rezultati moških ne bo statistično značilnih razlik.
3. Interakcija med spolom in časom dneva bo še močnejša v pogojih s hrupom v ozadju, pri čemer bodo ženske v neoptimalnem času ob hrupu pokazale največji upad.
Metoda
V raziskavi je sodelovalo 23 mladih odraslih (39,1 % žensk, 60,9 % moških), starih od 18 do 24 let (M = 20,0 let, SD = 1,6). Udeleženci so bili študentje Univerze v Groningenu z vmesnim do poznim kronotipom. Sodelujoči so bili izbrani preko portala SONA, kjer so bili na podlagi izmerjenega kronotipa in ostalih fizioloških značilnosti določeni primerni kandidati za sodelovanje v naši raziskavi. Kronotip je bil določen z Münchenskim vprašalnikom kronotipa ([MCTQ]; Roenneberg idr., 2003), pri katerem so sodelujoči dosegli MSFsc (angl. sleep-corrected mid-sleep time) 4.00 ali več.
Izključitveni kriteriji so bili: nosečnost, barvna slepota in potovanje čez več kot dva časovna pasova v zadnjih dveh mesecih. Nosečnost smo izključili zaradi njenega vpliva na hormonsko nihanje, ki presega obseg te študije. Barvno slepoto smo izključili zaradi vpliva na uspešnost reševanja pri vidnih nalogah s slikami, ki so bile vključene v drugih delih eksperimenta. Potovanje čez več kot dva pasova smo izključili, ker poruši notranjo biološko uro in ogrozi konsistentnost cirkadiane faze posameznikov (Waterhouse idr., 2007). Vsi udeleženci so podpisali informirano soglasje, odobreno s strani Etične komisije Fakultete za vedenjske in družbene vede Univerze v Groningenu.
Ženske so bile testirane izključno v nizkohormonskifazi (v prvih treh dneh folikularne faze) ali pa so bile uporabnice hormonske kontracepcije z nizkimi hormonskimi ravni (v tednu brez hormonov). Po drugi strani pa so bili moški vključeni ne glede na hormonski status. To velja za eno ključnih prednosti raziskave, saj smo z izbiro žensk v nizkohormonski fazi zmanjšali znotrajspolno variabilnost in lahko bolj neposredno preverjali hipotezo o morebitni večji občutljivosti v tej fazi.
Sodelujoči so bili testirani dvakrat z vmesnim premorom trajajočim 4 tedne oziroma v časovnem razmiku približno enega menstrualnega obdobja pri ženskah. Dani so jim bili vprašalniki o njihovem trenutnem fiziološkem stanju in lastnostih spanca ter kognitivni testi.
V raziskavi so bili uporabljeni sledeči vprašalniki in kognitivni testi:
Demografski vprašalnik (narejen za namene raziskave), ki je vseboval vprašanja o starosti, narodnosti, izobrazbi, zdravstvenem stanju, zdravilih in življenjskih navadah. Za ženske tudi vprašanja o menstrualnem ciklu in hormonski kontracepciji.
Münchenski vprašalnik kronotipa ([MCTQ], Roenneberg idr., 2003), ki je vseboval 23 vprašanj o času spanja, budnosti, delovnih in prostih dnevih. Izračunan je bil MSFsc, pri čemer višja vrednost pomeni poznejši kronotip.
Groningenska lestvica kakovosti spanja ([GSQS], Mulder-Hajonides van der Meulen, 1984), ki je vsebovala 15 postavk o kakovosti spanja prejšnjo noč.
Pittsburška lestvica kakovosti spanja ([PSQI], Buysse idr., 1989), ki je vsebovala 19 postavk o kakovosti spanja v preteklem mesecu.
Vprašalnik počutja in hormonskega stanja (narejen za namene raziskave), ki je vseboval 5-stopenjsko Likertovo lestvico (1–5) za utrujenost, budnost, anksioznost, veselje, razdraženost, jezo, umirjenost in vznemirjenost. Dodana so bila vprašanja o kajenju, kofeinu in (za ženske) menstrualni fazi, saj bi le-ta lahko mediirala pri vplivu na kognitivne sposobnosti (Conti et al., 2019; Kløve & Petersen, 2025; Le et al., 2020).
Prilagojen Reyev test slušnega učenja besed ([RAVLT], Rey, 1941), ki smo ga izvedli preko platforme Qualtrics. Besede je prebral računalniško generiran glas (frekvenca vzorčenja 24000 Hz, 32-bitna globina) z enosekundnim presledkom med besedami. Postopek je vključeval:
- A1–A5: pet ponovitev seznama 15 besed (seznam A). Po vsaki ponovitvi so udeleženci na glas ponovili vse besede
- B1: predstavitev novega seznama 15 besed (seznam B) s hrupom v ozadju (hrup je bil 7 dB tišji od povprečne glasnosti govora). Po danem seznamu so udeleženci na glas ponovili vse besede
- A6: takojšnji priklic originalnega seznama A (brez hrupa)
- A7: zakasnjeni priklic originalnega seznama A po 30 minutah
Za namene zmanjšanja učinkov vaje smo za vsak set testov (jutro/popoldne) uporabili različne sezname besed.
Udeleženci so opravili dva seta testov v razmaku približno štirih tednov. Vsak set je trajal približno 60 minut, opravljen pa je bil kar od doma udeležencev, preko prenosnega računalnika. Časi testiranja so bili določeni glede na kronotip. Jutranji (neoptimalni) set je potekal med 6.00 in 13.00, medtem ko je popoldanski ali optimalni set potekal med 12.00 in 19.00. Točen čas je bil odvisen od kronotipa posameznika. Na začetku vsakega seta so udeleženci izpolnili vprašalnike o spanju, razpoloženju in, za ženske, menstrualni fazi. Nato so opravili kognitivne naloge.
Po opravljenih testih smo podatke analizirali z IBM SPSS (29. verzija) z uporabo ANOVA za ponovljene meritve. Preverili smo predpostavke normalnosti (Q-Q grafi) in sferičnosti (zaradi le dveh nivojev ponovljene spremenljivke je bila ta neizogibno prisotna). Izvedli smo naslednje analize:
- 2 (čas dneva: jutro/popoldne) × 3 (poskus: A1–A3) ANOVA za krivuljo učenja
- 2 (čas dneva) × 2 (spol) ANOVA za A6 (kratkoročni priklic)
- 2 (čas dneva) × 2 (spol) ANOVA za A7 (dolgoročni priklic)
- 2 (čas dneva) × 2 (spol) ANOVA za razliko med A1 in B1 (učinek hrupa)
Rezultati
Povprečna sredina spanja ob prostih dneh, popravčkena za primankljaj spanca (MSFsc) za moške je bil 5.47 (SD = 0,37), za ženske 5.13 (SD = 0,17), kar ustreza zmerno izrazitemu večernemu tipu (Roenneberg, 2012). Trajanje spanja in kakovost spanja (GSQS) so bile primerljive med spoloma in med terminoma, kar nakazuje, da morebitni učinki niso posledica slabšega spanca. Udeleženci so poročali o pričakovanih razlikah v razpoloženju: v manj optimalnem času (tj. zjutraj), so bili bolj utrujeni, manj budni in manj srečni kot v optimalnem času (tj. popoldne). To potrjuje, da smo zajeli dejanski optimalni/neoptimalni čas posameznikov.
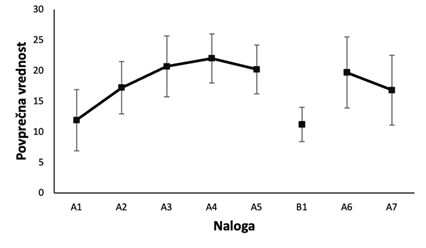
Pri krivulji verbalnega učenja (A1-A5) je ANOVA pokazala pomemben glavni učinek poskusa (F(4,32) = 21,927, p < ,001, η² = 0,733), kar pomeni, da so se udeleženci skozi ponovitve dejansko učili – število pravilno ponovljenih besed je naraščalo od A1 do A4, nato pa rahlo padlo pri A5. Ključno pa je, da kljub temu nismo našli glavnega učinka časa dneva (F(1,8) = 0,518, p = 0,492, η² = 0,061) ali glavnega učinka spola (F(1,8) = 0,402, p = 0,544, η² = 0,048). Prav tako ni bilo interakcije med časom dneva in spolom (F(1,8) = 2,509, p = 0,152, η² = 0,239). Učenje potemtakem ni bilo odvisno od tega, ali so bili udeleženci testirani zjutraj ali popoldne, niti od njihovega spola.
Slika 1
Skupne povprečne vrednosti uspešnosti in standardni odkloni pri nalogah A1–A7 in B1
Slika 2
Povprečne vrednosti uspešnosti (in standardni odkloni) pri nalogah A1–A7 in B1, ločene po spolu in času testiranja
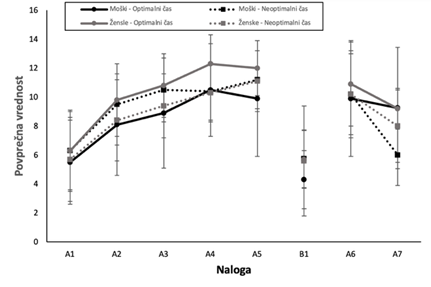
Raziskave kratkoročnega (A6) in dolgoročnega priklica (A7) so pokazale, da tudi pri takojšnjem priklicu in priklicu po 30 minutah nismo našli nobenih pomembnih učinkov. Rezultati pri kratkoročnem priklicu (A6) znašajo pri času dneva F(1,12) = 0,099, p = 0,758, η² = 0,008, pri spolu F(1,12) = 0,068, p = 0,798, η² = 0,006, in pri interakciji med njima F(1,12) = 0,025, p = 0,878, η² = 0,002. Pri dolgoročnem priklicu (A7) znašajo pri času dneva F(1,11) = 0,337, p = 0,573, η² = 0,030, pri spolu F(1,11) = 1,801, p = 0,207, η² = 0,141, in pri interakciji med obema F(1,11) = 2,108, p = 0,174, η² = 0,161. Ženske v nizkohormonski fazi in moški so torej pokazali podoben nivo takojšnjega in zakasnjenega priklica pri verbalnem učenju, ne glede na to, ali so bili testirani zjutraj ali popoldne.
Slika 3
Razlika v rezultatih med A1 in B1 za vse skupine
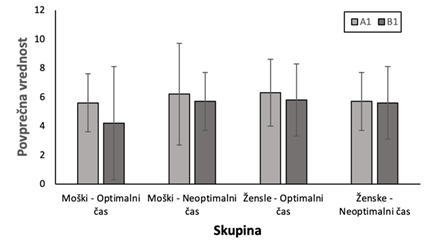
Primerjava učenja novega seznama v miru (A1) in učenja s hrupom (B1) prav tako ni pokazala nobenih pomembnih učinkov. Pri času dneva rezultati niso bili statistično značilni, F(1,8) = 0,209, p = 0,660, η² = 0,025, kar pomeni, da čas dneva ni imel pomembnega vpliva na izid. Prav tako se niso pokazale značilne razlike pri spolu, F(1,8) = 0,686, p = 0,432, η² = 0,079, kar nakazuje, da spol ni vplival na dosežene rezultate. Tudi interakcije med časom dneva in spolom ni dosegla statistične značilnosti, F(1,8) = 1,878, p = 0,208, η² = 0,190, kar pomeni, da se učinek časa dneva ni razlikoval glede na spol. Potemtakem ženske v nizkohormonski fazi ob hrupu niso pokazale večjega upada učenja kot moški, niti zjutraj niti popoldne.
Diskusija
Naša raziskava je imela tri glavne hipoteze:
1. da bo verbalni spomin boljši popoldne kot zjutraj pri poznih kronotipih
2. da bodo ženske v nizkohormonski fazi pokazale večji jutranji upad kot moški
3. da bo ta interakcija še močnejša ob prisotnem hrupu
Vse tri hipoteze pa so bile po analiziranju rezultatov ovržene.
Naše ugotovitve so v nasprotju s številnimi prejšnjimi študijami, ki so pokazale časovne učinke na učenje in spomin (Gorfine in Zisapel, 2007; Lehmann idr., 2013; Pötzl idr., 2024). Do tega bi lahko prišlo zaradi ozkega časovnega okna, saj smo posameznike testirali le nekaj ur narazen (npr. ob 8.00 in 15.00). Facer-Childs idr. (2018) so namreč pokazali, da pri poznih kronotipih največje razlike nastopijo šele 12 ur po prebujenju. Potemtakem je bilo naše popoldansko testiranje izvedeno prezgodaj, da bi ujeli ta vrhunec, zato bi ga bilo za opaznejšo zaznavo razlik treba premakniti na kasnejše, večerne ure. Poleg tega so Adan idr. (2012) opozorili, da kognitivna uspešnost ni odvisna le od pozornosti in spomina, temveč tudi od višjih kognitivnih funkcij (npr. reševanje problemov, kognitivna fleksibilnost). Omenjene procese bi veljalo meriti neposredno s testi verbalne fluentnosti, delovnega spomina in kognitivne fleksibilnosti ob vsakem času testiranja. Tako bi morebitni upad osnovne zmožnosti pomnjenja bilo mogoče ločiti od kompenzacijskih strategij, ki ta upad lahko prekrijejo. Mladi odrasli, oz. v našem vzorcu stari 18-24 let ob jutranji utrujenosti in zmanjšani budnosti pogosto posegajo po specifičnih kompenzacijskih strategijah, kot so združevanje besed v pomenske sklope, elaborativno ponavljanje ali tvorjenje pripovedi, kar jim pomaga nadomestiti kognitivni primanjkljaj (May in Hasher, 1998). Čeprav v naši raziskave rabe teh strategij nismo neposredno merili, obstoječe literature nakazujejo, da so taki mehanizmi pogost odziv na navzkrižje med cirkadiano uro in zahtevami naloge. Prilagojeni RAVLT torej ne meri le sprememb v zmožnosti pomnjenja, ampak tudi sposobnost kompenzacije.
Poleg tega smo z drugo hipotezo pričakovali, da bodo ženske v nizkohormonski fazi dosegale podobne rezultate moškim (kar se je tudi zgodilo), nismo pa pričakovali, da ne bo razlik v interakciji s časom dneva. Do tega bi mogoče lahko prišlo, ker smo ženske namerno testirali v nizkohormonski fazi, s čimer smo zmanjšali del hormonske variabilnosti, vendar je nismo popolnoma odstranili (Hampson in Morley, 2013; Pompili idr., 2020). Tudi v tej fazi lahko namreč prihaja do hormonskih nihanj, zato primerjave med ženskami in moškimi ne moremo razlagati izključno z razlikami v hormonskem statusu. V tej fazi so bile kognitivne zmožnosti žensk v nekaterih raziskavah podobne kot pri moških, kar je skladno z našimi rezultati. Vendar pa teh razlik ni mogoče pripisati zgolj hormonskemu statusu, saj se moški in ženske razlikujejo tudi v drugih bioloških dejavnikih (kot so indivualna senzorna občutljivost in starostne spremembe v delovanju) ter okoljskih in družbenih dejavnikih, med katerimi so poklicna izpostavljenost hrupu, raven vsakodnevnega stresa, življenski slog in spalni vzorci (Abbasi idr., 2022; Torquatti idr., 2019). Poleg tega se pričakovane razlike med spoloma v občutljivosti na cirkadiane motnje (Rångtell idr., 2019; Torquati idr., 2019) se nanašajo predvsem na pomanjkanje spanja in cirkadiano neusklajenost, ne pa nujno na sam čas dneva. Lo idr. (2012) so namreč pokazali, da tudi po 24 urah brez spanja kognicija sledi cirkadianemu ritmu, kar nakazuje na to, da sta učinka pomanjkanja spanja in časa dneva ločena mehanizma.
Naša tretja hipoteza o interakciji spola in časa dneva se prav tako ni potrdila. Možna razlaga za to bi lahko bila, da raziskave kažejo, da je občutljivost žensk na hrup povezana z ravnmi estrogena (Escribano idr., 2014; Sao in Jain, 2016). Pri tem pa hormonski status ni edini možni dejavnik, saj na občutljivost na hrup lahko vplivajo tudi individualne razlike, raven hrupa in miselna obremenitev. Ženske v nizkohormonski fazi namreč kažejo manjšo občutljivost (McFadden, 1998). Poleg tega obstaja možnost, da hrup ni bil dovolj moteč, saj smo uporabili hrup, ki je bil kar 7 dB tišji od govora, ki v povprečju znaša 60 dB (Olsen, 1998). Že Jäncke in Sandmann (2010) sta ugotovila, da glasba v ozadju ne vpliva na verbalno učenje, kar lahko kaže na to, da je bila intenziteta verjetno bolj podobna vplivu glasbe in ne dosti visoka, da bi povzročila dejanske spremembe v kognitivnih zmožnostih.
Med prednosti naše raziskave sodi zavedanje spola kot biološke spremenljivke, kar se je kazalo v premišljeni vključitvi tako žensk kot moških v uravnoteženem razmerju. Pri ženskah smo nadzorovali hormonski vpliv tako, da smo v raziskavo vključili izključno tiste v nizkohormonski fazi, s čimer smo zmanjšali znotrajspolno variabilnost. Uporabili smo uveljavljene nevropsihološke preizkuse, kot npr. prilagojen RAVLT, pri čemer so za jutranje in popoldanske termine bili uporabljeni različni seznami besed, da bi zmanjšali učinke vaje.
Po drugi strani pa ima naša raziskava tudi več omejitev. Vzorec je bil majhen (N = 23), zato je bila statistična moč za ugotavljanje interakcij nizka. Večina izračunanih koeficientov η² je sicer kazala majhne do srednje učinke, vendar ti niso dosegli statistične pomembnosti. Izvedba RAVLT prek spleta s tehnologijo Web Speech API je povzročila številne napake pri prepisovanju govora v besedilo, prav tako je povzročila tudi izgubo podatkov, saj je prišlo do napačnih prepisov in neprepoznanih besed. Prav tako nismo merili kortizola in testosterona, ki bi lahko bila ključna moderatorja naših rezultatov. Oba hormona namreč izrazito nihata čez dan. Testosteron pri moških doseže vrh zgodaj zjutraj in do večera upade za približno 10–25 %, izraziteje pri mlajših moških (Brambilla idr., 2009). Kortizol pa se najbolj poveča kmalu po prebujenju in nato skozi dan pada (Law in Clow, 2020). Oba hormona vplivata na verbalno učenje in spomin (Cherrier idr., 2005; Law in Clow, 2020). Ker se to dnevno nihanje prekriva s časom testiranja, bi lahko prispevalo k razlikam med jutranjimi in popoldanskimi rezultati, še posebej pri moških, pri katerih spolnih hormonov nismo nadzorovali. Z vključitvijo testosterona in kortizola bi tako lahko zmanjšali variabilnost tudi pri moških, obenem pa preverili njun moderatorski učinek. Poleg tega pa smo pri ženskah upoštevali le eno hormonsko fazo, zato ne vemo, ali bi v visokohormonski fazi dobili drugačne rezultate.
Kljub tem omejitvam ima naša raziskava pomembne implikacije. Na teoretični ravni rezultati krepijo bolj dinamične modele kognicije (Evansova idr., 2022), ki poudarjajo, da višje kognitivne funkcije, kot so kompenzacijske strategije, lahko izničijo preproste cirkadiane učinke. Odsotnost interakcije pri spolu kaže na potrebo po bolj podrobnem modelu spolnih razlik, kjer ne gre zgolj za binarno razliko med moškimi in ženskami, temveč za zapleteno interakcijo s hormonskim statusom. Učinek sočasnosti torej morda ni tako univerzalen, kot se pogosto predpostavlja, vsaj ne pri mladih, pri kratkih časovnih razmikih ali pri specifičnih hormonskih stanjih. Rezultati naše raziskave bi lahko imeli tudi številne praktične implikacije, med drugim dejstvo, da lahko verbalni spomin pri mladih odraslih v kliničnih, raziskovalnih in izobraževalnih okoljih brez skrbi preizkušamo v različnih urah dneva, ne da bi pričakovali sistematične napake zaradi cirkadianega ritma. To je še posebej pomembno za spletne študije in oddaljeno preverjanje, kjer nadzor nad uro testiranja ni vedno mogoč. Vse ugotovitve pa so vseeno zaradi majhnega vzorca preliminarne, in jih je treba ponoviti na večjem, bolj raznolikem vzorcu. Po pričakovanjih bi vključitev večjega starostnega razpona lahko privedla do večje medosebne variabilnosti, bolj izrazitih cirkadianih razlik ter večjega vpliva časovnih in starostnih dejavnikov na kognitivne zmogljivosti (Lehmann idr., 2013; Randler in Engelke, 2019).
Bolj splošno pa raziskovanje časa dneva in kronotipa ostaja pomembno za oblikovanje intervencij. Možen izziv bi lahko predstavljalo na primer določanje začetka pouka, ki se pogosto začne ob zelo zgodnjih urah, kar je med drugim lahko še posebej neugodno in kognitivno zahtevno za učence s poznim kronotipom. Naši rezultati pri tem opozarjajo, da učinkov ni možno posploševati, vendar je pri preučevanje kognitivnih procesov nujno upoštevati specifične značilnosti in okoliščine posameznika.
Zaključek
V tej raziskavi smo preučevali, ali verbalni spomin mladih odraslih s poznim kronotipom niha čez dan, ali se pri tem pojavljajo razlike med spoloma, in ali nizka raven ženskih hormonov poveča občutljivost glede na čas dneva in hrup v ozadju. Rezultati so pokazali odsotnost pomembnega učinka časa dneva, pomembnih razlik med spoloma, in prav tako prisotnosti statistično značilne interakcije med spolom in časom dneva kot tudi hrupa. Te ugotovitve se ne skladajo z nekaterimi prejšnjimi raziskavami in kažejo, da so mladi odrasli s poznim kronotipom morda kognitivno bolj odporni, kot smo predvidevali, vendar je zaradi majhnega vzorca to treba potrditi v nadaljnjih raziskavah. Kljub omejitvam naša raziskava ponuja koristne informacije za razumevanje pogojev, pod katerimi ničelni rezultati niso nujno pokazatelji odsotnosti učinka, temveč lahko kažejo na prisotnost kompenzacijskih mehanizmov. Raziskave v prihodnosti bi morale za večjo zanesljivost in ekološko veljavnost vključiti večji vzorec, denimo v luči večje starostne variabilnosti. Smiselno bi bilo vključiti tudi laboratorijsko testiranje ter meritve kortizola in testosterona. Poleg tega bi bilo koristno primerjati ženske v nizki in visoki hormonski fazi, preučiti učinek različnih ‘tipov’ zvočnih dražljajev (kot so stalen beli hrup, spremenljiv okoljski hrup ali smiseln govor v ozadju; Masullo idr., 2021), ter preizkusiti večji časovni razmik. Smiselno pa bi bilo dodati tudi polstrukturirane intervjuje, s katerimi bi zajeli kompenzacijske strategije, ki se jih udeleženke poslužujejo ob reševanju nalog in subjektivno doživljanje udeležencev. Poleg tega pa lahko prihodnje raziskave spola ne obravnavajo le binarno, temveč v ospredje postavijo različne biološke in okoljske dejavnike, vključno s hormonskim statusom, kronotipom ter specifičnimi okoljskimi vplivi, kot so zvočne značilnosti prostora, raven vsakodnevnega stresa in spalni vzorci. Celostno preučevanje teh dejavnikov namreč lahko pomembneje prispeva k razumevanju individualnih razlik, ki se izkažejo za odločilnejše od biološkega spola samega.
Literatura
Abbasi, A. M., Darvishi, E., Rodrigues, M. A. in Sayehmiri, K. (2022). Gender differences in cognitive performance and psychophysiological responses during noise exposure and different workloads. Applied Acoustics, 189, 108602. https://doi.org/10.1016/j.apacoust.2021.108602
Adan, A., Archer, S. N., Hidalgo, M. P., Di Milia, L., Natale, V. in Randler, C. (2012). Circadian typology: A comprehensive review. Chronobiology International, 29(9), 1153–1175. https://doi.org/10.3109/07420528.2012.719971
Alonso, A., Genzel, L. in Gomez, A. (2021). Sex and menstrual phase influences on sleep and memory. Current Sleep Medicine Reports, 7, 1–14. https://doi.org/10.1007/s40675-020-00201-y
Aloufi, N., Heinrich, A., Marshall, K. in Kluk, K. (2023). Sex differences and the effect of female sex hormones on auditory function: A systematic review. Frontiers in Human Neuroscience, 17, 1077409. https://doi.org/10.3389/fnhum.2023.1077409
Andreano, J. M. in Cahill, L. (2009). Sex influences on the neurobiology of learning and memory. Learning & Memory, 16(4), 248–266. https://doi.org/10.1101/lm.918309
Baskaran, C., Cunningham, B., Plessow, F., Singhal, V., Woolley, R., Ackerman, K. E., Slattery, M., Lee, H., Lawson, E. A., Eddy, K. in Misra, M. (2017). Estrogen Replacement improves verbal memory and executive control in oligomenorrheic/AMENORRHEIC athletes in a randomized controlled trial. The Journal of Clinical Psychiatry, 78(5). https://doi.org/10.4088/jcp.15m10544
Bleecker, M. L., Bolla-Wilson, K., Agnew, J. in Meyers, D. A. (1988). Age-related sex differences in verbal memory. Journal of Clinical Psychology, 44(3), 403–411. https://doi.org/10.1002/1097-4679(198805)44:3<403::AID-JCLP2270440315>3.0.CO;2-0
Borbély, A. A., Daan, S., Wirz-Justice, A. in Deboer, T. (2016). The two-process model of sleep regulation: A reappraisal. Journal of Sleep Research, 25(2), 131–143. https://doi.org/10.1111/jsr.12371
Brambilla, D. J., Matsumoto, A. M., Araujo, A. B. in McKinlay, J. B. (2009). The effect of diurnal variation on clinical measurement of serum testosterone and other sex hormone levels in men. The Journal of Clinical Endocrinology & Metabolism, 94(3), 907–913. https://doi.org/10.1210/jc.2008-1902
Buysse, D. J., Reynolds, C. F., Monk, T. H., Berman, S. R. in Kupfer, D. J. (1989). The Pittsburgh sleep quality index: A new instrument for psychiatric practice and research. Psychiatry Research, 28(2), 193–213. https://doi.org/10.1016/0165-1781(89)90047-4
Cajochen, C. in Schmidt, C. (2025). The Circadian Brain and cognition. Annual Review of Psychology, 76(1), 115–141. https://doi.org/10.1146/annurev-psych-022824-043825
Caras M. L. (2013). Estrogenic modulation of auditory processing: a vertebrate comparison. Frontiers in neuroendocrinology, 34(4), 285–299. https://doi.org/10.1016/j.yfrne.2013.07.006
Cherrier, M. M., Matsumoto, A. M., Amory, J. K., Asthana, S., Bremner, W., Peskind, E. R., Raskind, M. A. in Craft, S. (2005). The role of aromatization in testosterone supplementation: Effects on cognition in older men. Neurology, 64(2), 290–296. https://doi.org/10.1212/01.WNL.0000149639.25136.CA
Conti, A. A., McLean, L., Tolomeo, S., Steele, J. D. in Baldacchino, A. (2019). Chronic tobacco smoking and neuropsychological impairments: A systematic review and meta-analysis. Neuroscience & Biobehavioral Reviews, 96, 143–154. https://doi.org/10.1016/j.neubiorev.2018.11.017
Drake, E. B., Henderson, V. W., Stanczyk, F. Z., McCleary, C. A., Brown, W. S., Smith, C. A., Rizzo, A. A., Murdock, G. A. in Buckwalter, J. G. (2000). Associations between circulating sex steroid hormones and cognition in normal elderly women. Neurology, 54(3), 599–599. https://doi.org/10.1212/wnl.54.3.599
Duffy, J. F., Cain, S. W., Chang, A.-M., Phillips, A. J., Münch, M. Y., Gronfier, C., Wyatt, J. K., Dijk, D.-J., Wright, K. P. in Czeisler, C. A. (2011). Sex difference in the near-24-hour intrinsic period of the human circadian timing system. Proceedings of the National Academy of Sciences, 108(supplement_3), 15602–15608. https://doi.org/10.1073/pnas.1010666108
Ennis, G. E., Moffat, S. D. in Hertzog, C. (2016). The cortisol awakening response and cognition across the adult lifespan. Brain and Cognition, 105, 66–77. https://doi.org/10.1016/j.bandc.2016.04.001
Escribano, B., Quero, I., Feijóo, M., Tasset, I., Montilla, P. in Túnez, I. (2014). Role of noise and music as anxiety modulators: Relationship with ovarian hormones in the rat. Applied Animal Behaviour Science, 152, 73–82. https://doi.org/10.1016/j.applanim.2013.12.006
Evansová, K., Červená, K., Novák, O., Dudysová, D., Nekovářová, T., Fárková, E. in Fajnerová, I. (2022). The effect of chronotype and time of assessment on cognitive performance. Biological Rhythm Research, 53(4), 608–627. https://doi.org/10.1080/09291016.2020.1822053
Facer-Childs, E. R., Boiling, S. in Balanos, G. M. (2018). The effects of time of day and chronotype on cognitive and physical performance in healthy volunteers. Sports Medicine – Open, 4, 1–12. https://doi.org/10.1186/s40798-018-0162-z
Faust, L., Bradley, D., Landau, E., Noddin, K., Farland, L. V., Baron, A. in Wolfberg, A. (2019). Findings from a mobile application-based cohort are consistent with established knowledge of the menstrual cycle, fertile window, and conception. Fertility and Sterility, 112(3), 450–457. https://doi.org/10.1016/j.fertnstert.2019.05.008
Gale, S. D., Baxter, L., Connor, D. J., Herring, A. in Comer, J. (2007). Sex differences on the Rey Auditory Verbal Learning Test and the Brief Visuospatial Memory Test–Revised in the elderly: Normative data in 172 participants. Journal of Clinical and Experimental Neuropsychology, 29(5), 561–567. https://doi.org/10.1080/13803390600864760
Genzel, L., Kiefer, T., Renner, L., Wehrle, R., Kluge, M., Grözinger, M., Steiger, A. in Dresler, M. (2012). Sex and modulatory menstrual cycle effects on sleep related memory consolidation. Psychoneuroendocrinology, 37(7), 987–998. https://doi.org/10.1016/j.psyneuen.2011.11.006
Goldstein, D., Hahn, C. S., Hasher, L., Wiprzycka, U. J. in Zelazo, P. D. (2007). Time of day, circadian arousal, and executive function in early adolescence. Developmental Science, 10(6), 725–732. https://doi.org/10.1111/j.1467-7687.2012.01137.x
Gorfine, T., in Zisapel, N. (2007). Melatonin and the human hippocampus, a time dependant interplay. Journal of Pineal Research, 43(1), 80–86. https://doi.org/10.1111/j.1600-079X.2007.00446.x
Grotzinger, H., Pritschet, L., Shapturenka, P., Santander, T., Murata, E. M., in Jacobs, E. G. (2024). Diurnal fluctuations in steroid hormones tied to variation in intrinsic functional connectivity in a densely sampled male. The Journal of Neuroscience, 44(22). https://doi.org/10.1523/jneurosci.1856-23.2024
Hampson, E., in Morley, E. E. (2013). Estradiol concentrations and working memory performance in women of reproductive age. Psychoneuroendocrinology, 38(12), 2897–2904. https://doi.org/10.1016/j.psyneuen.2013.07.020
Harrington, Y. A., Parisi, J. M., Duan, D., Rojo-Wissar, D. M., Holingue, C., in Spira, A. P. (2022). Sex hormones, sleep, and memory: Interrelationships across the adult female lifespan. Frontiers in Aging Neuroscience, 14, 800278. https://doi.org/10.3389/fnagi.2022.800278
Jain, S. in Nataraja, N. P. (2019). The Effect of Fatigue on Working Memory and Auditory Perceptual Abilities in Trained Musicians. American journal of audiology, 28(2S), 483–494. https://doi.org/10.1044/2019_AJA-IND50-18-0102
Jäncke, L., in Sandmann, P. (2010). Music listening while you learn: No influence of background music on verbal learning. Behavioral and Brain Functions, 6, 1–14. https://doi.org/10.1186/1744-9081-6-3
Jørgensen, J. T., Hansen, J., Westendorp, R. G., Nabe-Nielsen, K., Stayner, L. T., Simonsen, M. K., in Andersen, Z. J. (2021). Shift work and incidence of dementia: A Danish Nurse Cohort study. Alzheimer’s & Dementia, 16(9), 1268–1279. https://doi.org/10.1002/alz.12126
Kelly, R. M., McDermott, J. H. in Coogan, A. N. (2022). Differences in sleep offset timing between weekdays and weekends in 79,161 adult participants in the UK biobank. Clocks in Sleep, 4(4), 658–674. https://doi.org/10.3390/clockssleep4040050
Kløve, K. in Petersen, A. (2025). A systematic review and meta-analysis of the acute effect of caffeine on attention. Psychopharmacology, 242, 1909–1930. https://doi.org/10.1007/s00213-025-06775-1
Law, R. in Clow, A. (2020). Stress, the cortisol awakening response and cognitive function. International Review of Neurobiology, 150, 187–217. https://doi.org/10.1016/bs.irn.2020.01.001
Le, J., Thomas, N. in Gurvich, C. (2020). Cognition, the menstrual cycle, and premenstrual disorders: A review. Brain Sciences, 10(4), 198. https://doi.org/10.3390/brainsci10040198
Lehmann, C. A., Marks, A. D. in Hanstock, T. L. (2013). Age and synchrony effects in performance on the Rey Auditory Verbal Learning Test. International Psychogeriatrics, 25(4), 657–665. https://doi.org/10.1017/S1041610212002252
Lo, J. C., Groeger, J. A., Santhi, N., Arbon, E. L., Lazar, A. S., Hasan, S., von Schantz, M., Archer, S. N. in Dijk, D.-J. (2012). Effects of partial and acute total sleep deprivation on performance across cognitive domains, individuals and circadian phase. PLoS ONE, 7(9). https://doi.org/10.1371/journal.pone.0045987
Matchock, R. L., Dorn, L. D. in Susman, E. J. (2007). Diurnal and seasonal cortisol, testosterone, and DHEA rhythms in boys and girls during puberty. Chronobiology international, 24(5), 969–990. https://doi.org/10.1080/07420520701649471
Masullo, M., Ruggiero, G., Alvarez Fernandez, D., Iachini, T. in Maffei, L. (2021). Effects of urban noise variability on cognitive abilities in indoor spaces: Gender differences. Noise & Vibration Worldwide, 52(10), 313–322. https://doi.org/10.1177/09574565211030703
May, C. P. in Hasher, L. (2017). Synchrony affects performance for older but not younger neutral-type adults. Timing & Time Perception, 5(2), 129–148. https://doi.org/10.1163/22134468-00002087
McFadden, D. (1998).Sex differences in the auditory system. Developmental Neuropsychology, 14(2–3), 261–298. https://doi.org/10.1080/87565649809540712
Mulder-Hajonides van der Meulen, W. R. E. H., Wijnberg, J. R. in De Diana, I. P. F. (1984). Measurement of subjective sleep quality. Book of abstracts.
Munnilari, M., Bommasamudram, T., Easow, J., Tod, D., Varamenti, E., Edwards, B. J., Ravindrakumar, A., Gallagher, C. in Pullinger, S. A. (2024). Diurnal variation in variables related to cognitive performance: A systematic review. Sleep and Breathing, 28(1), 495–510. https://doi.org/10.1007/s11325-023-02895-0
Olsen, W. O. (1998). Average speech levels and spectra in various speaking/listening conditions: A summary of the Pearson, Bennett, & Fidell (1977) report. American Journal of Audiology, 7(2), 21–25. https://doi.org/10.1044/1059-0889(1998/012)
Pompili, A., Iorio, C. in Gasbarri, A. (2020). Effects of sex steroid hormones on memory. Acta Neurobiologiae Experimentalis, 80(2), 117–128. https://doi.org/10.21307/ane-2020-012
Pötzl, L., Wolf, O. T. in Merz, C. J. (2024). The influence of time of day on memory recognition for faces. Hormones and Behavior, 165, 105633. https://doi.org/10.1016/j.yhbeh.2024.105633
Randler, C. in Engelke, J. (2019). Gender differences in chronotype diminish with age: A meta-analysis based on morningness/chronotype questionnaires. Chronobiology International, 36(7), 888–905. https://doi.org/10.1080/07420528.2019.1585867
Rångtell, F. H., Karamchedu, S., Andersson, P., Liethof, L., Olaya Búcaro, M., Lampola, L., Schiöth, H. B., Cedernaes, J. in Benedict, C. (2018). A single night of sleep loss impairs objective but not subjective working memory performance in a sex‐dependent manner. Journal of Sleep Research, 28(1). https://doi.org/10.1111/jsr.12651
Rey, A. (1941). L’examen psychologique dans les cas d’encéphalopathie traumatique. Archives de Psychologie, 28, 286–340.
Roenneberg, T., Wirz-Justice, A. in Merrow, M. (2003). Life between clocks: Daily temporal patterns of human chronotypes. Journal of Biological Rhythms, 18(1), 80–90. https://doi.org/10.1177/0748730402239679
Roenneberg, T., Kuehnle, T., Juda, M., Kantermann, T., Allebrandt, K., Gordijn, M. in Merrow, M. (2007). Epidemiology of the human circadian clock. Sleep Medicine Reviews, 11(6), 429–438. https://doi.org/10.1016/j.smrv.2007.07.005
Roenneberg, T. (2012). What is chronotype? Sleep and Biological Rhythms, 10, 75–76. https://doi.org/10.1111/j.1479-8425.2012.00541.x
Sao, T. in Jain, C. (2016). Effects of hormonal changes in temporal perception, speech perception in noise and auditory working memory in females. Hearing, Balance and Communication, 14(2), 94–100. https://doi.org/10.3109/21695717.2016.1155837
Sattari, N., McDevitt, E. A., Panas, D., Niknazar, M., Ahmadi, M., Naji, M., Baker, F. C. in Mednick, S. C. (2018). The effect of sex and menstrual phase on memory formation during a nap. Neurobiology of Learning and Memory, 145, 119–128. https://doi.org/10.1016/j.nlm.2017.09.007
Torquati, L., Mielke, G. I., Brown, W. J., Burton, N. W. in Kolbe-Alexander, T. L. (2019). Shift work and poor mental health: A meta-analysis of longitudinal studies. American Journal of Public Health, 109(11), e13–e20. https://doi.org/10.2105/AJPH.2019.305278
Valdez, P., Ramírez, C. in García, A. (2012). Circadian rhythms in cognitive performance: Implications for neuropsychological assessment. Chronophysiology and Therapy, 2, 81–92. https://doi.org/10.2147/CPT.S32586
Valdez, P., Ramírez, C. in García, A. (2014). Circadian rhythms in cognitive processes: Implications for school learning. Mind, Brain, and Education, 8(4), 161–168. https://doi.org/10.1111/mbe.12056
Voyer, D., Saint Aubin, J., Altman, K. in Gallant, G. (2021). Sex differences in verbal working memory: A systematic review and meta-analysis. Psychological Bulletin, 147(4), 352-398. https://doi.org/10.1037/bul0000320
Waterhouse, J., Reilly, T., Atkinson, G. in Edwards, B. (2007). Jet lag: Trends and coping strategies. The Lancet, 369(9567), 1117–1129. https://doi.org/10.1016/S0140-6736(07)60529-7


You May Also Like